
Przez kilkadziesiąt lat w muzealnych zbiorach znajdowały się szczątki opancerzonych dinozaurów przypisywane jednemu gatunkowi. Miały potężne maczugi ogonowe, szerokie czaszki i grube kostne płyty chroniące ciało. Dopiero szczegółowe porównania wykazały, że część tych zwierząt w rzeczywistości należała do innych rodzajów. Euoplocefal, który żył około 76 milionów lat temu na terenach dzisiejszej Kanady, stał się bohaterem jednej z ciekawszych rewizji taksonomicznych w badaniach nad ankylozaurami. Równocześnie naukowcy próbowali ustalić, jak silnie mógł uderzać ogonem i dlaczego wewnątrz jego czaszki znajdowały się wyjątkowo długie, kręte kanały nosowe.
W 2013 roku rozdzielono szkielety kilku opancerzonych dinozaurów
Przez znaczną część XX wieku Euoplocephalus tutus uchodził za wyjątkowo dobrze poznanego przedstawiciela ankylozaurów. Przypisywano mu liczne czaszki, fragmenty szkieletów i maczugi ogonowe pochodzące z różnych stanowisk Ameryki Północnej. Niektóre znaleziska wyraźnie różniły się budową, ale długo uznawano, że mogą należeć do jednego, bardzo zmiennego gatunku.
Sytuacja zmieniła się w maju 2013 roku, kiedy Victoria Arbour i Philip Currie opublikowali w czasopiśmie „PLOS ONE” wyniki obszernej rewizji taksonomicznej. Badacze przeanalizowali między innymi kształt czaszek, opancerzenie szyi, budowę miednicy i elementów ogona. Uwzględnili również informacje o pochodzeniu skamieniałości z poszczególnych warstw geologicznych.
Okazało się, że różnice między częściami szkieletów nie były przypadkowe. Pewne zestawy cech występowały razem i odpowiadały znaleziskom pochodzącym z określonych poziomów skalnych. Trudno było wyjaśnić je wyłącznie wiekiem, płcią czy indywidualną zmiennością zwierząt.
Autorzy potwierdzili odrębność kilku taksonów wcześniej łączonych z euoplocefalem. Przywrócili między innymi rodzaje Anodontosaurus i Scolosaurus, a także podtrzymali odrębność Dyoplosaurus. Każdy z nich wyróżniał się własnym zestawem cech anatomicznych. Szczególnie przydatne okazało się porównanie pancerza szyjnego oraz ozdób kostnych czaszki. U części zwierząt różnice dotyczyły również kształtu maczug ogonowych. W rezultacie liczba skamieniałości, które można wiarygodnie zaliczyć do Euoplocephalus tutus, została ograniczona.
Rewizja miała znaczenie wykraczające poza samo nazewnictwo. Wiele wcześniejszych rekonstrukcji opancerzonego dinozaura powstawało bowiem na podstawie kości należących do kilku różnych rodzajów. Po ponownym przeanalizowaniu materiału paleontolodzy musieli ostrożniej podchodzić do odtwarzania proporcji ciała i wyglądu charakterystycznej maczugi.
Pierwszy okaz nie miał nawet zachowanego ogona
Historia euoplocefala rozpoczęła się w 1897 roku. Kanadyjski paleontolog Lawrence Morris Lambe prowadził wówczas poszukiwania skamieniałości w Albercie, w rejonie rzeki Red Deer. Na jej wschodnim brzegu, niedaleko ujścia Berry Creek, zebrał fragmenty szkieletu opancerzonego dinozaura.
Znalezisko było bardzo niekompletne. Zachowała się część sklepienia czaszki oraz fragment pierwszego kostnego półpierścienia osłaniającego szyję. Nie było ani kompletnego tułowia, ani kończyn, ani maczugi ogonowej, która później stała się najbardziej rozpoznawalną cechą tego zwierzęcia.
W 1902 roku Lambe opisał materiał pod nazwą Stereocephalus tutus. W ówczesnej klasyfikacji opancerzone dinozaury łączono w szerzej rozumiane grupy, a ich wzajemne pokrewieństwo pozostawało słabo poznane. Sam okaz dostarczał niewielu informacji o ogólnych proporcjach zwierzęcia.
Pojawił się również problem związany z nazwą rodzajową. Stereocephalus był już wcześniej używany w zoologii dla rodzaju chrząszczy, dlatego nie mógł pozostać obowiązującą nazwą dinozaura. W 1910 roku Lambe zaproponował zastąpienie go nazwą Euoplocephalus, oznaczającą w przybliżeniu „dobrze opancerzoną głowę”. Drugi człon nazwy, tutus, nawiązuje do ochrony zapewnianej przez pancerz. Od tego czasu gatunek funkcjonuje jako Euoplocephalus tutus.
Pierwotne szczątki otrzymały oznaczenie CMN 210 i znajdują się w zbiorach Canadian Museum of Nature. Są szczególnie istotne dla klasyfikacji, ponieważ stanowią holotyp, czyli okaz, z którym formalnie związana jest nazwa gatunku. To właśnie jego cechy muszą być uwzględniane podczas rozstrzygania, czy później odkryte kości rzeczywiście należą do euoplocefala.
Kostny pancerz chronił grzbiet, boki i szyję
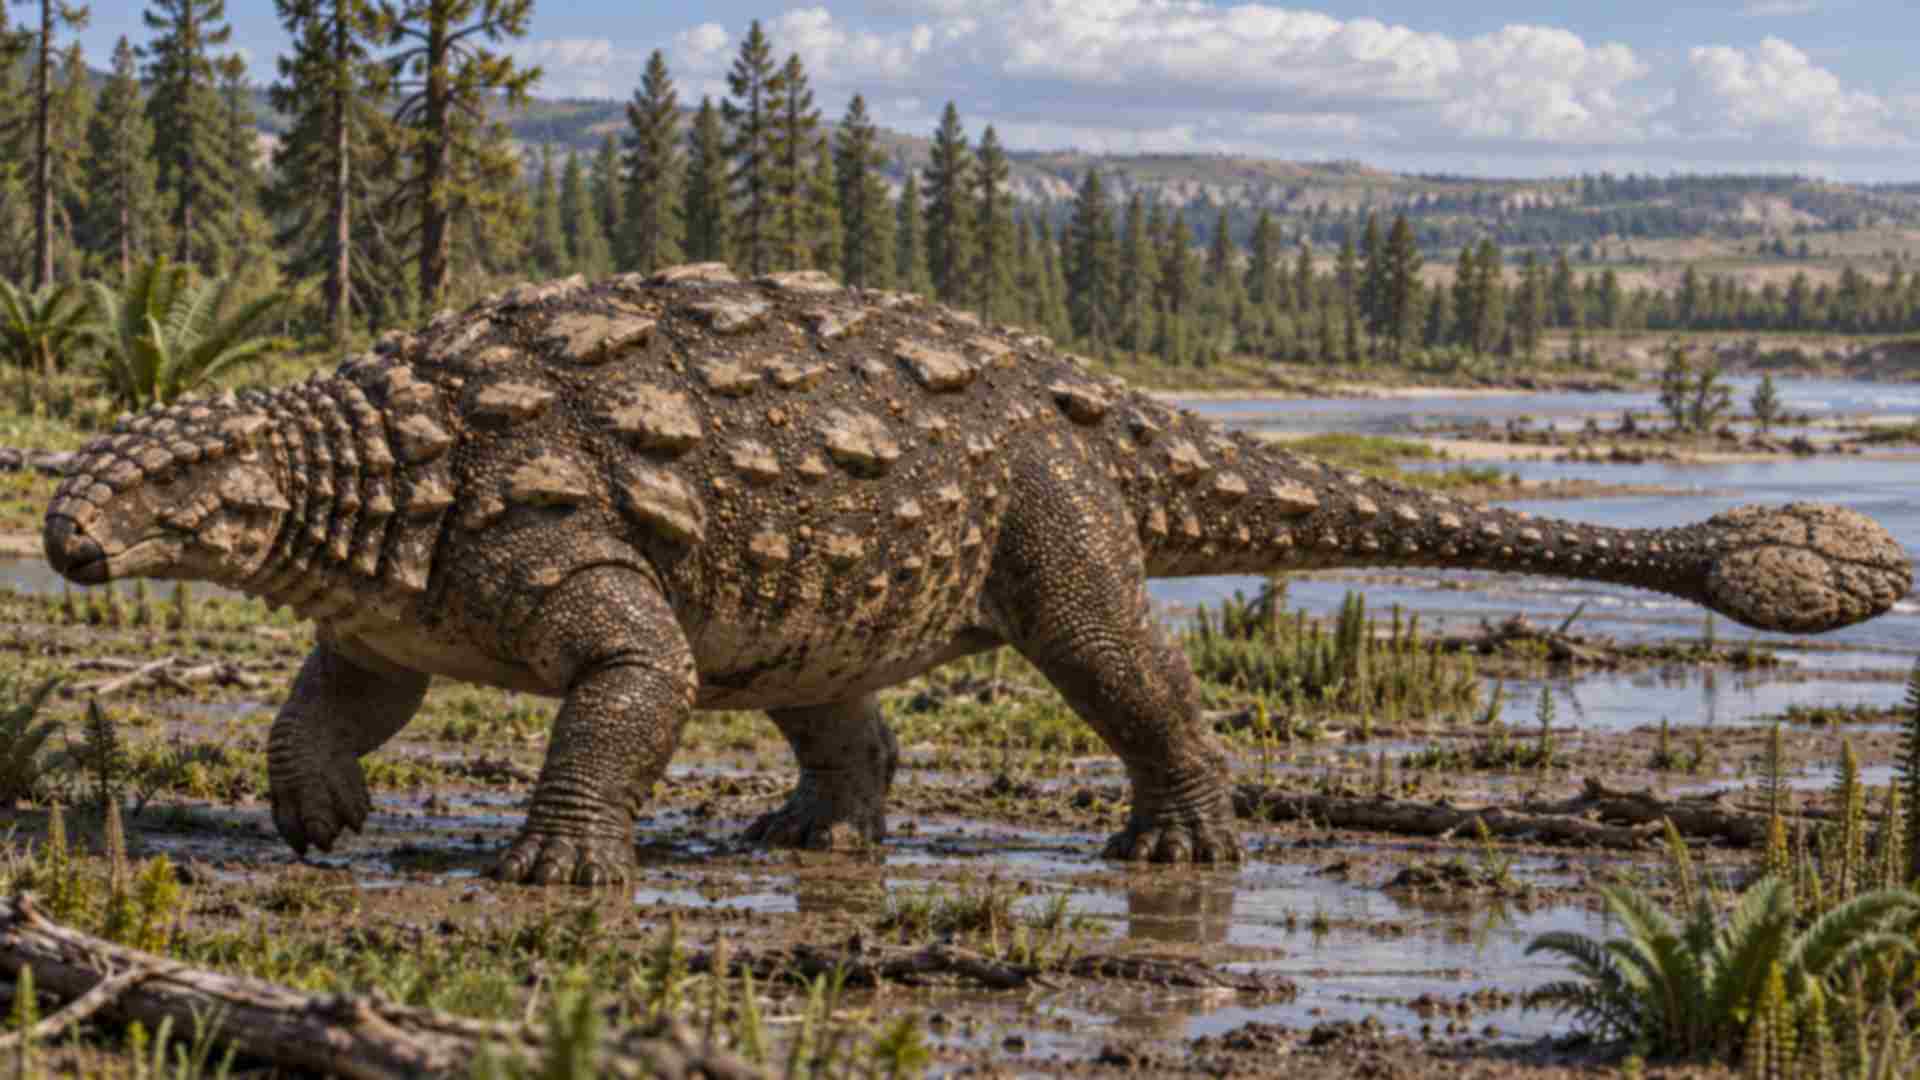
Euoplocefal był dużym, czworonożnym roślinożercą o szerokim tułowiu, stosunkowo krótkich kończynach i nisko osadzonej głowie. Według danych londyńskiego Natural History Museum mógł osiągać około siedmiu metrów długości i ważyć w przybliżeniu dwie tony. Są to szacunki, które należy traktować ostrożnie ze względu na zmiany w klasyfikacji przypisywanych mu szkieletów.
Najbardziej charakterystyczną cechą zwierzęcia było opancerzenie. W skórze znajdowały się liczne osteodermy, czyli elementy kostne powstające niezależnie od właściwego szkieletu. Różniły się kształtem i wielkością. Niektóre przypominały niewielkie płytki, inne tworzyły większe wypukłości lub struktury z wyraźnie zaznaczonym grzbietem.
Opancerzenie obejmowało znaczną część grzbietu, boków tułowia i szyi. Szczególnie rozbudowane były półpierścienie szyjne, które tworzyły osłonę złożoną z kostnych elementów. Ich budowa dostarczyła później wielu informacji wykorzystywanych podczas rozdzielania poszczególnych rodzajów ankylozaurów. Głowa również była silnie zabezpieczona. Powierzchnię czaszki pokrywały charakterystyczne kostne wypukłości, a w okolicach oczu występowały zmodyfikowane elementy kostne. Dawniej rozważano, czy mogły tworzyć ruchome osłony gałek ocznych. Ich dokładne działanie pozostaje jednak niepewne.
Odmienne struktury kostne występowały u innych dinozaurów z grupy Thyreophora, obejmującej ankylozaury i stegozaury. U znacznie starszego stegozaura charakterystyczne płyty na grzbiecie i kolce na ogonie tworzyły konstrukcję wyraźnie różniącą się od pancerza ankylozaurów. Obie grupy należały do szerszej linii ewolucyjnej opancerzonych dinozaurów.
Nie znamy dokładnego wyglądu skóry euoplocefala ani naturalnego ubarwienia jego pancerza. Zachowane skamieniałości pozwalają rozpoznać budowę wielu kostnych elementów, lecz pełne odtworzenie ich rozmieszczenia nadal wymaga porównań z innymi okazami.
Maczuga powstała z usztywnionego ogona i dużych osteoderm
Ogon euoplocefala był czymś znacznie bardziej skomplikowanym niż długi wyrostek zakończony ciężką kością. Jego tylna część została silnie przekształcona, a poszczególne elementy tworzyły konstrukcję zdolną przenosić znaczne obciążenia.
Końcowe kręgi ogonowe miały wydłużone wyrostki, które zachodziły na sąsiednie kości. Ograniczało to ich wzajemną ruchomość i tworzyło sztywny odcinek przypominający rękojeść. Dodatkowe wzmocnienie zapewniały skostniałe struktury biegnące wzdłuż tej części ogona.
Na samym końcu znajdowała się masywna maczuga złożona z dużych osteoderm. Jej wewnętrzna budowa była bardziej złożona, niż sugerowałby wygląd zewnętrzny. Badania tomograficzne wykazały, że znaczna część kości tworzących takie maczugi miała strukturę gąbczastą, co zmniejszało ich masę w porównaniu z jednolitą, zwartą bryłą kostną.
Usztywnienie końcowego fragmentu ogona nie oznaczało całkowitej utraty ruchomości. Odcinek położony bliżej tułowia pozostawał bardziej elastyczny i był wyposażony w rozbudowane mięśnie. Dzięki nim ankylozaurydy mogły prawdopodobnie wykonywać szerokie ruchy ogonem na boki.
Przez lata przyjmowano, że maczuga służyła przede wszystkim do odpierania ataków dużych drapieżników. Dopiero szczegółowe analizy biomechaniczne pozwoliły sprawdzić, czy taka interpretacja jest zgodna z budową zachowanych kości.
Modele komputerowe pokazały, jak silnie mógł uderzać ogon
W sierpniu 2009 roku Victoria Arbour opublikowała w „PLOS ONE” badanie poświęcone sile uderzeń maczug ogonowych ankylozaurydów. Wykorzystała pomiary skamieniałości, tomografię komputerową oraz matematyczne modele ruchu ogona. Badaczka odtworzyła możliwy sposób pracy mięśni i oszacowała obciążenia powstające podczas bocznych uderzeń. Analizowała między innymi, jak rozmiary maczugi wpływały na jej prędkość i energię przekazywaną przy kontakcie z innym obiektem.
Wyniki sugerowały, że duże maczugi mogły generować siły wystarczające do łamania kości. Mniejsze i średnie struktury nie osiągały w przyjętym modelu równie wysokich wartości. Oznaczało to, że rozmiary końcowego fragmentu ogona miały istotny wpływ na potencjalne możliwości jego wykorzystania.
Jeszcze w tym samym roku Arbour i Eric Snively przedstawili kolejną analizę, tym razem poświęconą naprężeniom występującym w samych maczugach. Wykorzystali metodę elementów skończonych, pozwalającą komputerowo symulować działanie obciążeń na trójwymiarowe struktury kostne.
Badania wykazały, że mniejsze i średnie maczugi prawdopodobnie mogły wytrzymywać silne uderzenia bez poważnych uszkodzeń. Przy największych istniało większe ryzyko przeciążenia niektórych elementów, zwłaszcza w pobliżu połączenia sztywnej części ogona z końcową maczugą.
Naukowcy podkreślali jednak ograniczenia symulacji. Nie uwzględniały one wszystkich właściwości tkanek miękkich, a sposób zamodelowania połączeń między kośćmi mógł wpływać na rozkład naprężeń. Istotne jest również to, że część maczug analizowanych w 2009 roku przypisywano wówczas euoplocefalowi. Po rewizji taksonomicznej z 2013 roku stało się jasne, że nie wszystkie takie znaleziska można bez zastrzeżeń zaliczać do tego gatunku.
Wyniki badań potwierdzają zatem przede wszystkim biomechaniczne możliwości maczug ankylozaurydów jako grupy. Nie dowodzą, że każdy euoplocefal potrafił zadawać uderzenia o takiej samej sile.
Ślady na pancerzu zuula wskazały na walki między ankylozaurami
Przez długi czas maczugi przedstawiano głównie jako broń przeciwko mięsożernym teropodom. Inne wyjaśnienie ich funkcji zyskało mocniejsze podstawy dzięki badaniu opublikowanemu w grudniu 2022 roku. Victoria Arbour, Lindsay Zanno i David Evans przeanalizowali wyjątkowo dobrze zachowany szkielet Zuul crurivastator, opancerzonego dinozaura odkrytego w amerykańskiej Montanie. Zwierzę należało do ankylozaurydów, ale nie było euoplocefalem.
Na jego pancerzu badacze zauważyli uszkodzenia niektórych osteoderm. Szczególnie interesujące okazało się rozmieszczenie urazów, które koncentrowały się po bokach tułowia, w pobliżu bioder. Nie tworzyły przypadkowego układu, jakiego można byłoby oczekiwać po uszkodzeniach powstających w różnych okolicznościach.
Autorzy uznali, że zmiany mogły być skutkiem uderzeń zadawanych przez inne ankylozaury podczas walk. Boczne ruchy ogona pozwalałyby trafiać właśnie w podobne rejony ciała przeciwnika. Interpretację wspierały także obserwacje dotyczące rozwoju i zróżnicowania wielkości maczug.
Na tej podstawie naukowcy zaproponowali, że maczugi mogły ewoluować przede wszystkim w związku z rywalizacją między osobnikami własnego gatunku. Starcia mogły dotyczyć dostępu do partnerów lub pozycji społecznej. Jest to hipoteza dotycząca mechanizmów ewolucyjnych, której nie należy utożsamiać z bezpośrednim dowodem konkretnych zachowań euoplocefala.
Nie oznacza to także, że maczuga nie mogła służyć do obrony przed drapieżnikami. Jej budowa pozwalała na zadawanie silnych uderzeń, niezależnie od tego, przeciwko komu były kierowane. W przypadku samego euoplocefala nadal brakuje równie przekonujących śladów urazów, które jednoznacznie dokumentowałyby takie starcia. Odkrycia zuula pozwalają jednak inaczej spojrzeć na funkcję ogonowej broni całej rodziny.
Długie kanały nosowe mogły chronić organizm przed utratą ciepła
Maczuga nie była jedynym elementem anatomii euoplocefala poddanym szczegółowym analizom komputerowym. W 2018 roku Jason Bourke, Wm. Ruger Porter i Lawrence Witmer opublikowali badanie poświęcone wyjątkowo skomplikowanej budowie jego przewodów nosowych. Zastosowali modele komputerowe przepływu powietrza przez czaszki dwóch opancerzonych dinozaurów: Euoplocephalus tutus i Panoplosaurus mirus. Drugi z nich należał do nodozaurydów, czyli innej rodziny ankylozaurów.
U obu zwierząt kanały nosowe miały bardzo długi i kręty przebieg. Powietrze pokonywało w nich liczne zakręty, zanim docierało do dalszych odcinków układu oddechowego. Naukowcy postanowili sprawdzić, czy taka budowa mogła pomagać w regulowaniu temperatury i wilgotności wdychanego powietrza.
Symulacje wykazały, że rozbudowane przewody nosowe mogły działać jak wydajne wymienniki ciepła. Podczas wdechu powietrze ogrzewało się, natomiast przy wydechu część energii cieplnej mogła zostać odzyskana przez tkanki wyściełające kanały.
W modelu przygotowanym dla euoplocefala oszacowano oszczędność energii cieplnej podczas wydechu na około 84 procent, przy zastosowanych przez badaczy warunkach symulacji. Dla panoplozaura wynik wynosił około 65 procent. Różnice sugerowały, że euoplocefal mógł dysponować szczególnie wydajnym układem wymiany ciepła. Autorzy rozważali również możliwość, że takie przystosowanie pomagało utrzymywać odpowiednią temperaturę mózgu.
Nie były to jednak bezpośrednie pomiary fizjologii wymarłych zwierząt. Wyniki uzyskano na podstawie cyfrowych rekonstrukcji, modeli przepływu powietrza i przyjętych parametrów. Badanie pokazało, jak mogły działać przewody nosowe ankylozaurów, ale nie pozwoliło ustalić dokładnej temperatury ich ciała.
Niewielkie zęby zdradzały roślinożerny tryb życia
Mimo potężnego opancerzenia euoplocefal był przystosowany do pobierania pokarmu roślinnego. Jego głowa znajdowała się stosunkowo nisko, a proporcje ciała wskazują, że większość czasu prawdopodobnie spędzał na czterech kończynach.
Przednią część pyska zakończał rogowy dziób. Za nim znajdowały się niewielkie zęby przystosowane do rozdrabniania pobieranego pokarmu. Nie tworzyły one tak rozbudowanych baterii zębowych jak u niektórych innych roślinożernych dinozaurów późnej kredy. Paleontolodzy przypuszczają, że ankylozaurydy mogły żerować przede wszystkim na roślinności rosnącej niedaleko ziemi. Sprzyjała temu budowa kończyn, krótka szyja i położenie głowy. Nie udało się jednak ustalić, jakie konkretnie rośliny stanowiły podstawę diety euoplocefala.
Jego szeroki tułów mógł mieścić rozbudowany przewód pokarmowy, umożliwiający przetwarzanie dużej ilości materiału roślinnego. To prawdopodobne przystosowanie dużego roślinożercy, ale szczegółów trawienia nie można bezpośrednio odtworzyć na podstawie zachowanych kości.
W tym samym środowisku występowały również dinozaury o znacznie bardziej wyspecjalizowanym uzębieniu. Różnice między nimi mogły wpływać na sposób pobierania pokarmu i wykorzystywania dostępnej roślinności.
W Albercie euoplocefal spotykał inne wielkie dinozaury
Najważniejsze szczątki Euoplocephalus tutus pochodzą z formacji Dinosaur Park w kanadyjskiej Albercie. Skały te dokumentują środowisko późnej kredy sprzed około 76–75 milionów lat, kiedy na obszarze dzisiejszego Dinosaur Provincial Park rozciągała się rozległa równina rzeczna.
W krajobrazie znajdowały się liczne koryta rzek, tereny zalewowe i mokradła. Roślinność zapewniała pożywienie dużym roślinożercom, a obszar położony był niedaleko wybrzeża morza śródlądowego dzielącego wówczas Amerykę Północną.
Euoplocefal dzielił te tereny z innymi opancerzonymi dinozaurami, ceratopsami oraz hadrozaurami. Wśród tych ostatnich występował między innymi lambeozaur, którego niezwykły grzebień i kanały nosowe poznano dokładniej dzięki tomografii komputerowej.
Duża różnorodność roślinożerców wskazuje, że lokalny ekosystem zapewniał pożywienie zwierzętom o odmiennych rozmiarach i przystosowaniach. Nie wiadomo jednak dokładnie, czy euoplocefal konkurował z hadrozaurami o te same rośliny, czy korzystał z innych zasobów. W formacji Dinosaur Park odkryto również szczątki dużych drapieżników, między innymi gorgozaura i daspletozaura. Ich obecność wskazuje, że opancerzone roślinożerne dinozaury żyły w środowisku zamieszkiwanym przez potężne mięsożerne teropody.
Nie odnaleziono jednak jednoznacznego dowodu pozwalającego odtworzyć konkretny atak takiego drapieżnika na euoplocefala. Pancerz i maczuga mogły zapewniać skuteczną ochronę, lecz nie oznacza to, że każde spotkanie z dużym mięsożercą kończyło się walką.
Znaczenie ma również dokładny wiek skamieniałości. Nie wszystkie duże drapieżniki kredowej Ameryki Północnej żyły równocześnie. Znacznie później żył tyranozaur Tyrannosaurus rex, dlatego nie należy przedstawiać go jako bezpośredniego przeciwnika euoplocefala.
Nie wszystkie maczugi pozwalają rozpoznać gatunek
Rewizja taksonomiczna z 2013 roku pozostawiła paleontologom istotny problem. Poszczególne rodzaje ankylozaurydów miały wiele podobnych cech, a w muzealnych zbiorach znajdują się liczne niekompletne okazy pozbawione czaszki lub innych diagnostycznych części szkieletu.
Sama obecność maczugi ogonowej nie wystarcza więc do pewnego rozpoznania euoplocefala. Konieczne jest uwzględnienie jej budowy, porównanie z innymi skamieniałościami i sprawdzenie wieku warstw, z których pochodzi znalezisko. Szczególnie pomocne są dobrze zachowane czaszki oraz fragmenty pancerza szyjnego. To właśnie ich anatomia pozwoliła badaczom dostrzec cechy odróżniające euoplocefala od anodontosaurów, dyoplozaurów i skolozaurów.
Nadal nie wiadomo, jak bardzo wygląd euoplocefala zmieniał się podczas dorastania. Brakuje także wystarczających danych pozwalających ocenić, czy samce i samice różniły się wielkością maczug lub układem opancerzenia. Nie można zatem wykluczyć, że część obserwowanej zmienności miała związek z wiekiem albo indywidualnymi cechami zwierząt.
W badaniach pozostaje również otwarta kwestia rzeczywistego wykorzystania ogonowej broni. Modele biomechaniczne wskazują, że ankylozaurydy mogły zadawać mocne uderzenia, a ślady urazów zuula przemawiają za możliwością starć między osobnikami własnego gatunku. Nie jest jednak pewne, czy euoplocefal zachowywał się dokładnie w taki sam sposób.
Ponad sto lat po opisaniu pierwszych szczątków nadal nie dysponujemy pełnym obrazem jego życia. Kolejne dobrze zachowane szkielety mogłyby pomóc ustalić szczegóły budowy pancerza, rozwój maczugi oraz różnice między osobnikami. Duże znaczenie mają też ponowne analizy dawnych zbiorów muzealnych. To właśnie dzięki nim okazało się, że kości przez dziesięciolecia przypisywane jednemu opancerzonemu dinozaurowi dokumentowały w rzeczywistości bardziej zróżnicowaną faunę późnokredowej Ameryki Północnej.
Źródła
- Lambe L.M. (1902), New genera and species from the Belly River Series (mid-Cretaceous), „Contributions to Canadian Palaeontology”, t. 3, s. 25–81.
- Lambe L.M. (1910), Note on the Parietal Crest of Centrosaurus apertus and a Proposed New Generic Name for Stereocephalus tutus, „The Ottawa Naturalist”, t. 24, nr 9, s. 149–151.
- Vickaryous M.K., Russell A.P. (2003), A redescription of the skull of Euoplocephalus tutus (Archosauria: Ornithischia): a foundation for comparative and systematic studies of ankylosaurian dinosaurs, „Zoological Journal of the Linnean Society”, t. 137, nr 1, s. 157–186. DOI: 10.1046/j.1096-3642.2003.00045.x.
- Arbour V.M. (2009), Estimating Impact Forces of Tail Club Strikes by Ankylosaurid Dinosaurs, „PLOS ONE”, t. 4, nr 8, e6738. DOI: 10.1371/journal.pone.0006738.
- Arbour V.M., Snively E. (2009), Finite Element Analyses of Ankylosaurid Dinosaur Tail Club Impacts, „The Anatomical Record”, t. 292, nr 9, s. 1412–1426. DOI: 10.1002/ar.20987.
- Arbour V.M., Currie P.J. (2013), Euoplocephalus tutus and the Diversity of Ankylosaurid Dinosaurs in the Late Cretaceous of Alberta, Canada, and Montana, USA, „PLOS ONE”, t. 8, nr 5, e62421. DOI: 10.1371/journal.pone.0062421.
- Bourke J.M., Porter W.R., Witmer L.M. (2018), Convoluted nasal passages function as efficient heat exchangers in ankylosaurs (Dinosauria: Ornithischia: Thyreophora), „PLOS ONE”, t. 13, nr 12, e0207381. DOI: 10.1371/journal.pone.0207381.
- Arbour V.M., Zanno L.E., Evans D.C. (2022), Palaeopathological evidence for intraspecific combat in ankylosaurid dinosaurs, „Biology Letters”, t. 18, nr 12, artykuł 20220404. DOI: 10.1098/rsbl.2022.0404.